文献分享(visium HD + xenium)--空间组学解析神经母细胞瘤中的肾上腺素能(ADRN)和间充质(MES)细胞状态
原创
文献分享(visium HD + xenium)--空间组学解析神经母细胞瘤中的肾上腺素能(ADRN)和间充质(MES)细胞状态
原创
追风少年i
发布于 2026-10-12 08:34:16
发布于 2026-10-12 08:34:16
作者,Evil Genius
今日我们分享文献,分享文献最直观的好处就是,做PPT的时候有大量的素材和出处。
核心问题:神经母细胞瘤患者肿瘤中是否存在恶性间充质(MES)肿瘤细胞,此前一直存在争议。
简要
将6种空间组学平台与单细胞/单核RNA测序结合,分析了54例神经母细胞瘤肿瘤,旨在解决关于恶性间充质(MES)肿瘤细胞是否存在的争议。
- 利用患者来源异种移植瘤(O-PDX) 衍生的基因特征,成功识别出MES肿瘤细胞。
- 发现MES评分越高,患者预后越差。
- 该研究通过多平台交叉验证,确认了ADRN和MES两种细胞状态在患者肿瘤中真实存在。
Highlights
- 空间多组学图谱:构建了54例神经母细胞瘤肿瘤的空间多组学图谱,解析了细胞邻域结构。
- O-PDX衍生特征:利用O-PDX衍生的基因特征,在患者肿瘤中揭示了ADRN和MES细胞状态。
- 多方法验证:通过形态学、多种正交实验验证了ADRN和MES细胞状态。
- 临床意义:MES评分越高,预后越差,且独立于临床风险因素。
引言
1. 儿童实体瘤与细胞异质性
- 儿童实体瘤起源于发育过程中的中胚层、内胚层和/或外胚层,保留其胚胎起源的分子和细胞特征。
- scRNA-seq和snRNA-seq揭示肿瘤内存在异质性恶性细胞群体,代表胚胎谱系中不同发育阶段。
- 例如,胚胎性横纹肌肉瘤包含类似骨骼肌分化多个阶段的恶性细胞。
- 肿瘤微环境(TME)中存在非恶性细胞,其与恶性细胞的信号交流可影响治疗反应。
2. 神经母细胞瘤的发育起源
- 神经母细胞瘤是发育中的交感肾上腺谱系的儿童实体瘤。
- 交感肾上腺发育过程中:
- 第一波神经嵴迁移(小鼠E8.5-E9.5;人类PCD27-PCD30)产生增殖性交感神经母细胞。
- 早期交感神经母细胞产生节后交感神经元,分为肾上腺素能(ADRN) 或胆碱能。
- 晚期交感神经母细胞产生施万细胞、间充质(MES)细胞和肾上腺髓质的肾上腺素能嗜铬细胞。
- 过去50年建立的神经母细胞瘤细胞系具有ADRN或MES特征, reminiscent of their developmental origins。
- 基于这些细胞系的基因表达微阵列数据,开发了ADRN和MES特征,并广泛应用于患者肿瘤。
3. 争议:患者肿瘤中是否存在恶性MES细胞?
- 尽管细胞系中存在ADRN和MES细胞状态的证据,但近期多项sc/snRNA-seq研究对患者肿瘤中是否存在恶性MES神经母细胞瘤群体提出质疑。
- 这些研究依赖于1967年至1986年间建立的细胞系衍生的ADRN/MES基因表达特征。
- 因此,无法确定MES细胞系特征是否反映其来源患者肿瘤中的原始细胞。
4. 研究目标
- 整合患者肿瘤的sc/snRNA-seq与空间组学平台,表征神经母细胞瘤的瘤内和瘤间细胞异质性。
- 核心目标:确定患者肿瘤中是否存在恶性MES神经母细胞瘤细胞,并开发能将其与TME中正常间充质细胞明确区分开的实验方法。
- 利用早期传代神经母细胞瘤原位患者来源异种移植瘤(O-PDX),其保留患者肿瘤的分子、细胞和遗传特征,且缺乏人类TME细胞,作为开发改进ADRN和MES基因表达特征的资源。
- 确定ADRN和MES基因表达程序是否反映在染色质景观、细胞形态和蛋白质组中。
- 在大型神经母细胞瘤患者队列中评估肿瘤细胞异质性的临床意义。
结果
结果1、神经母细胞瘤空间图谱
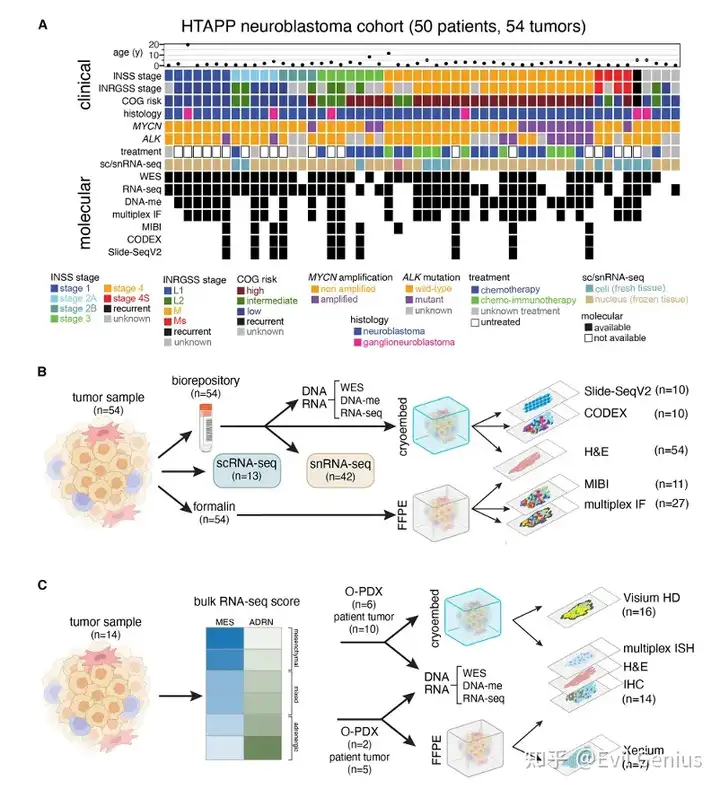
样本收集:
- 选取50例患者的54个肿瘤,涵盖疾病临床广度:诊断年龄、INSS/INRGSS分期、COG风险组、组织学(神经母细胞瘤和节细胞神经母细胞瘤)。
- 包括MYCN扩增(n=12)和ALK功能获得性突变(n=9)。
- 21例未治疗;27例(主要为3期或4期)在化疗期间获取,其中9例接受抗GD2抗体化学免疫治疗;6例治疗状态未知。
- 3例患者贡献多个样本:HTAPP-312(化疗前后)、HTAPP-800(2个原发部位)、HTAPP-811(化学免疫治疗期间3个时间点)。
测序与 profiling:
- 12例新鲜标本进行scRNA-seq,41例冷冻标本进行snRNA-seq,1例同时进行两者。
- 成功从长达10年前保存的样本中生成snRNA-seq数据。
- 正交分子表征:全外显子测序(WES,n=42)、bulk RNA-seq(n=43)、DNA甲基化(Illumina 850k BeadChip,n=34)。
空间分析:
- 肿瘤平行分配用于FFPE和冷冻包埋。
- 所有54例样本进行H&E染色;27例进行多重免疫荧光;11例进行MIBI(多重离子束成像)。
- 10例肿瘤的连续冷冻切片进行Slide-SeqV2空间转录组学和CODEX空间蛋白质组学,以映射MES和ADRN肿瘤细胞相对于TME的空间分布。
- 11例患者肿瘤中,10例在3个空间平台(Slide-SeqV2、CODEX、MIBI)上进行分析,以支持交叉验证和未来计算方法开发。
- 补充Slide-SeqV2分析:对O-PDX和ADRN/MES混合的患者肿瘤进行Visium HD和Xenium空间转录组学。
结果2、神经母细胞瘤TME包含免疫、内皮和基质细胞
数据分析:
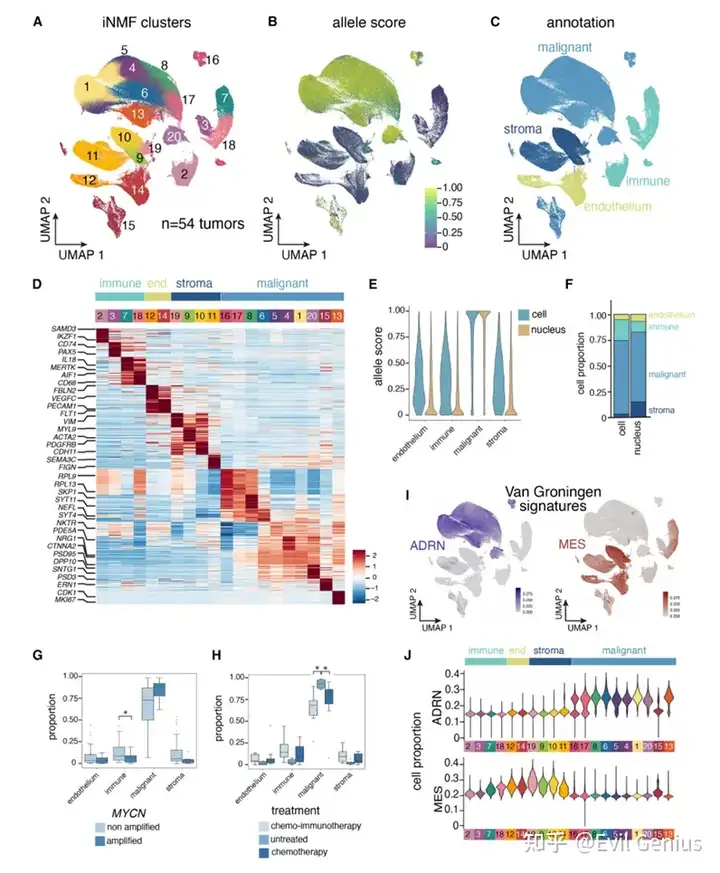
- 合并所有54例肿瘤样本数据,分析543,948个高质量细胞和细胞核图谱(87,981个细胞;455,967个细胞核)。
- 使用iNMF(整合非负矩阵分解)统一处理并共嵌入共享低维潜在空间。
主要发现:
- snRNA-seq图谱表达基因较少(1,549基因/核 vs. 2,308基因/细胞;p<2.2×10⁻¹⁶),线粒体读数较低(0.5% vs. 4.0%;p<2.2×10⁻¹⁶),解离诱导应激评分较低。
- 将图谱划分为20个聚类,使用单倍型感知的拷贝数变异调用识别出10个恶性聚类。
- 基于拷贝数的方法对于区分恶性神经母细胞瘤细胞与非恶性TME细胞至关重要,因为MES肿瘤细胞可能与正常间充质基质细胞共享基因表达特征。
- TME进一步分为免疫、内皮和基质聚类。
- scRNA-seq数据包含更多免疫细胞,snRNA-seq数据包含更多基质细胞。
- 贝叶斯组成模型:MYCN扩增神经母细胞瘤免疫细胞比例降低(FDR<0.05),与先前报道一致;治疗后的中危和高危肿瘤显示恶性细胞减少、免疫细胞增加(FDR<0.05)。
- 细胞系衍生的ADRN基因表达特征在10个恶性聚类中富集,MES基因表达特征在基质和内皮聚类中富集。
- 这些分析定义了神经母细胞瘤的非恶性细胞景观,并强调了在转录相似的正常基质细胞背景下识别恶性MES细胞的挑战。
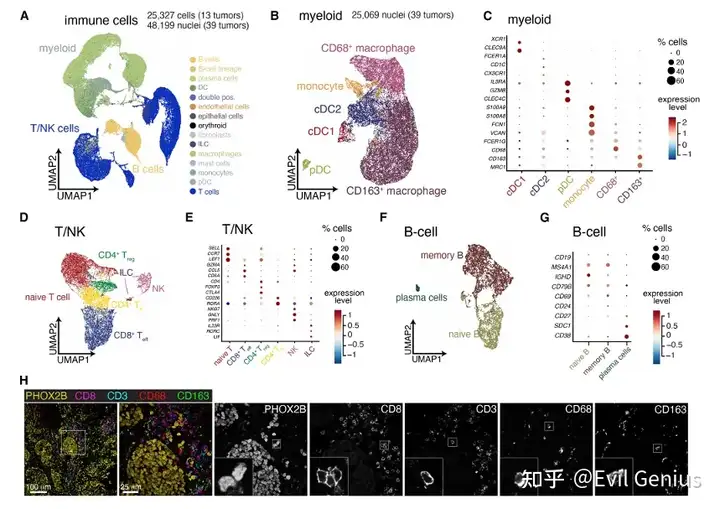
结果3、神经母细胞瘤中免疫细胞分布
免疫细胞分析:
- 重新整合25,327个细胞图谱和48,199个细胞核图谱,使用CellTypist注释为主要类别。
- 由于组织解离增加scRNA-seq中的应激模块基因表达,后续分析聚焦于snRNA-seq图谱。
髓系细胞:
- 来自39例肿瘤的25,069个髓系细胞核图谱,涵盖6个亚群。
- 大多数髓系细胞(75.0%)为巨噬细胞,包括CD68+和CD163+亚群。
- CD68+巨噬细胞富集线粒体基因(MT-CO1/2/3和MT-ND1/2/3/4/5)和铁蛋白复合物基因(FTL和FTH)。
- CD163+巨噬细胞表达促肿瘤巨噬细胞标志物,包括IL18和MSR1(CD204)。
T细胞和NK细胞:
- 16,784个T细胞和自然杀伤(NK)细胞核图谱,包括4个T细胞亚群、1个NK细胞亚群和1个先天淋巴细胞亚群。
B细胞:
- 在部分肿瘤中检测到4,880个初始、记忆和浆细胞B细胞核图谱。
空间验证:
- 对27例HTAPP肿瘤进行5-plex免疫荧光显微镜检查,PHOX2B染色识别恶性细胞,4种免疫标志物(CD3、CD8、CD68、CD163)标记T细胞和巨噬细胞群体。
- 多重荧光显示区室化表型:PHOX2B+肿瘤细胞排列在排除免疫、内皮和基质细胞的肿瘤区域。
结果4、空间蛋白质组学识别独特细胞邻域
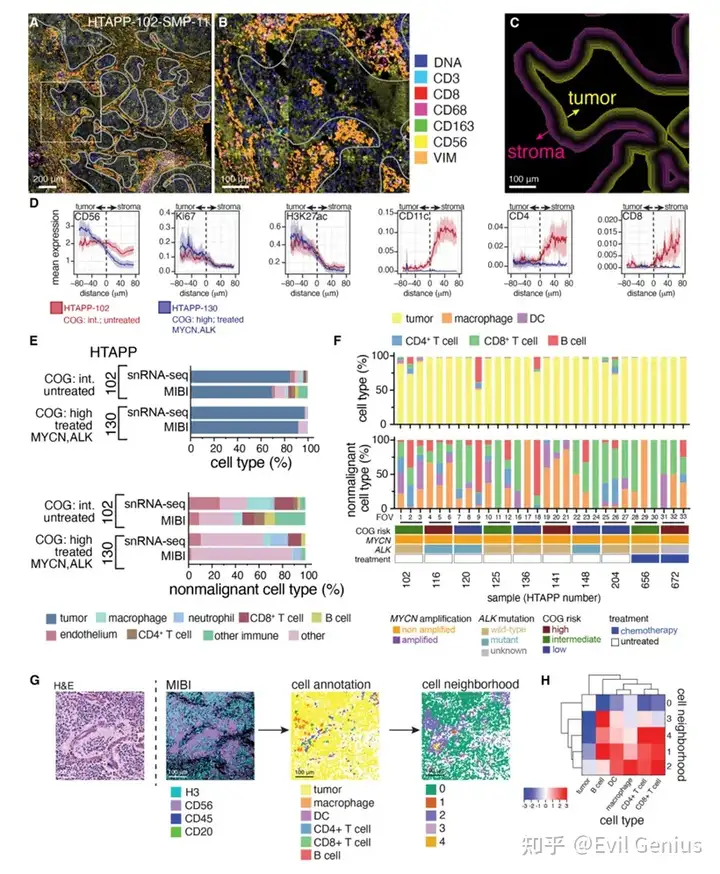
MIBI分析:
- 使用41种蛋白质在存档FFPE组织中进行高分辨率空间映射,结合金属偶联抗体和飞行时间质谱。
- 拼接2例高质量肿瘤标本(HTAPP-102:COG中危、未治疗;HTAPP-130:COG高危、治疗、MYCN扩增、ALK突变)的MIBI捕获,生成大型2,000×2,000-μm阵列。
- 开发计算方法PLANB(patch-level analysis of neuroblastoma),以逐步像素方式量化标记物相对于肿瘤和基质的表达。
- CD56/NCAM、Ki67和H3K27ac在肿瘤邻域内富集,而免疫效应物(CD11c、CD4、CD8)在基质邻域中富集。
- 对10例患者样本的30个视野进行MIBI分析,观察到免疫细胞密度的样本间和区域间变异,与sc/snRNA-seq数据一致。
- 邻域分析(n=30)识别出细胞类型共定位的广泛模式:恶性肿瘤细胞分离为1个细胞邻域(CN0),免疫细胞极少;同时识别出4个 distinct 免疫富集CN。
- 例如,CN3富含B细胞,而巨噬细胞主要定位于CN2,CN2还包含CD4+ T细胞、CD8+ T细胞和树突状细胞(DC)。
CODEX分析:
- 对10例HTAPP样本(与MIBI数据匹配)生成全切片CODEX数据,使用52种抗体。
- 通过VIM、COL4和PDPN表达区分CD56+、CD45+细胞。
- CD56+、VIM+、COL4+、PDPN+细胞具有细长形态,邻近神经毡,与施万细胞基质一致。
- CD56+、VIM+、COL4+、PDPN+细胞具有神经母细胞瘤肿瘤细胞的组织学特征(小蓝圆细胞),且Ki67阳性。
- 由于抗体面板探针数量有限,无法明确辨别这些细胞是否为恶性MES细胞。
- 识别出具有特征性共定位细胞类型的CN:恶性CD56+细胞(橙色)主要与其他所有细胞类型分离于CN0(粉色),与MIBI和多重免疫荧光分析一致。
- 3个邻域(CN8、CN11、CN12)富集免疫细胞类型,尤其是DC和T细胞;7个CN主要为基质,包括2个淋巴富集邻域(CN1和CN7)和5个富集VIM+、COL4+基质细胞的CN。
- 所有10例样本的细胞-细胞相互作用矩阵的无监督分析确认了肿瘤细胞与免疫和基质组分的区室化,CD56+肿瘤细胞自缔合形成无免疫细胞的生态位,被包含DC、基质细胞和T细胞的第二生态位包围。
组织微阵列验证:
- 生成包含46例神经母细胞瘤和7个非恶性组织块的103个核心的组织微阵列(TMA);39/46样本独立于发现队列。
- 使用30-plex抗体面板的CODEX确认恶性CD56+细胞在更广泛队列中与非恶性基质分离。
结果5、空间转录组学中的患者内和患者间异质性
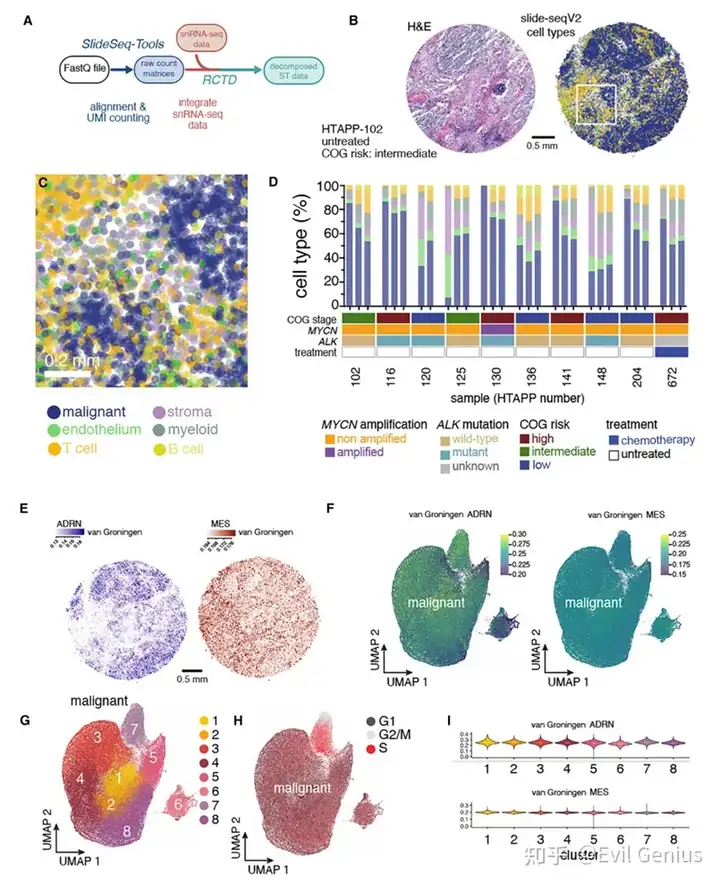
Slide-SeqV2分析:
- 对10例肿瘤的19个冷冻切片进行Slide-SeqV2分析,生成10-μm分辨率的空间转录组数据。
- 使用RCTD(robust cell-type decomposition)与snRNA-seq图谱整合,成功分配所有6种细胞类型(恶性细胞、内皮、基质、髓系细胞、T细胞、B细胞),确认恶性细胞CN与TME空间分离。
- 应用van Groningen ADRN和MES特征(源自细胞系)到整合数据。
- 当恶性细胞和细胞核图谱被 subsetted 并重新整合时,通过iNMF识别出8个聚类。
- 聚类7富集S期细胞,但没有任何聚类显示van Groningen ADRN或MES特征的显著差异,证实了先前sc/snRNA-seq和空间蛋白质组学的结果。
结果6、神经母细胞瘤中的肾上腺素能和间充质细胞异质性
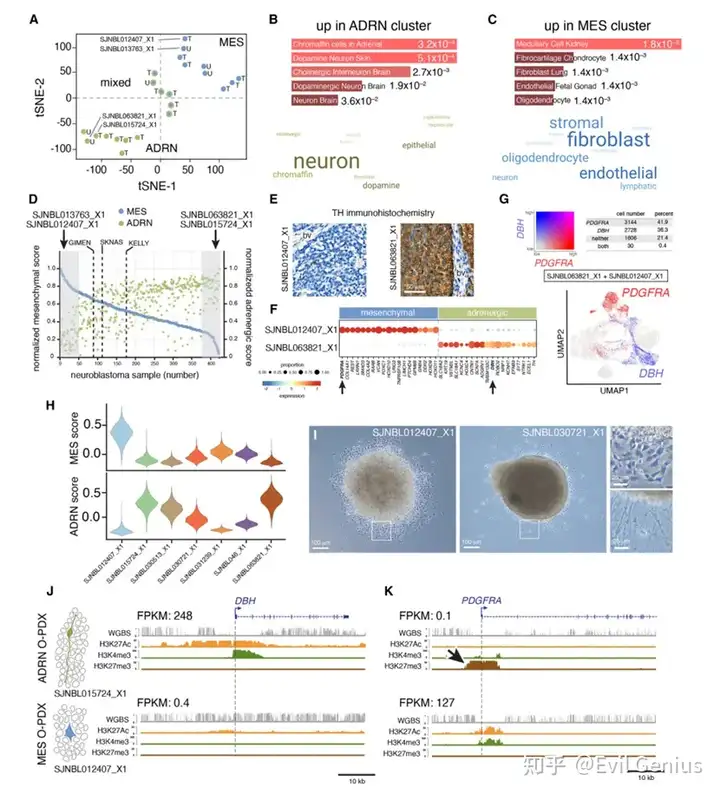
O-PDX bulk RNA-seq:
- 对23例来自CSTN的神经母细胞瘤O-PDX进行bulk RNA-seq。
- O-PDX源自未治疗肿瘤(n=6)和化疗期间收集的肿瘤样本(n=17)。
- top 1,000差异表达基因的t-SNE图揭示3个 distinct 聚类:1个富集ADRN基因,1个富集MES基因,1个混合。
- 来自治疗和未治疗患者的O-PDX存在于每个聚类中。
- 开发ADRN和MES基因特征,并应用于449例神经母细胞瘤样本,包括患者肿瘤、O-PDX、3D类器官、2D细胞培养和细胞系。
- 组织学和免疫组化(IHC)发现与基因特征评分一致:ADRN肿瘤表达酪氨酸羟化酶(TH),细胞核小而圆;MES肿瘤TH表达细胞少,细胞核形状不规则,细胞外基质(ECM)表达。
- 使用sc/snRNA-seq确认这些结果,证明O-PDX中ADRN和MES基因互斥表达。
O-PDX衍生类器官:
- ADRN类器官延伸神经突数百微米,而MES类器官具有成纤维细胞样、纺锤形形态。
- ADRN O-PDX的电子显微镜显示广泛的神经丛和致密核心囊泡,而MES O-PDX缺乏这些特征并分泌胶原ECM。
染色质景观:
- 对9例O-PDX和8个细胞系进行ChIP-seq,检测8种组蛋白标记、CTCF、RNA-PolI和BRD4。
- ADRN和MES基因表达程序反映在染色质结构中,若干MES基因在ADRN O-PDX中被多梳抑制。
蛋白质组学:
- 对6例O-PDX(2 MES、2 ADRN、2混合)进行串联质量标签(TMT)蛋白质组学,生物学三重重复。
- 确认MES和ADRN特征基因编码的蛋白质在O-PDX亚型间差异表达。
- 这些分子和细胞特征共同确认神经母细胞瘤O-PDX具有 distinct 的ADRN和MES细胞类型。
结果7、间充质和肾上腺素能神经母细胞瘤细胞的空间分布
O-PDX选择:
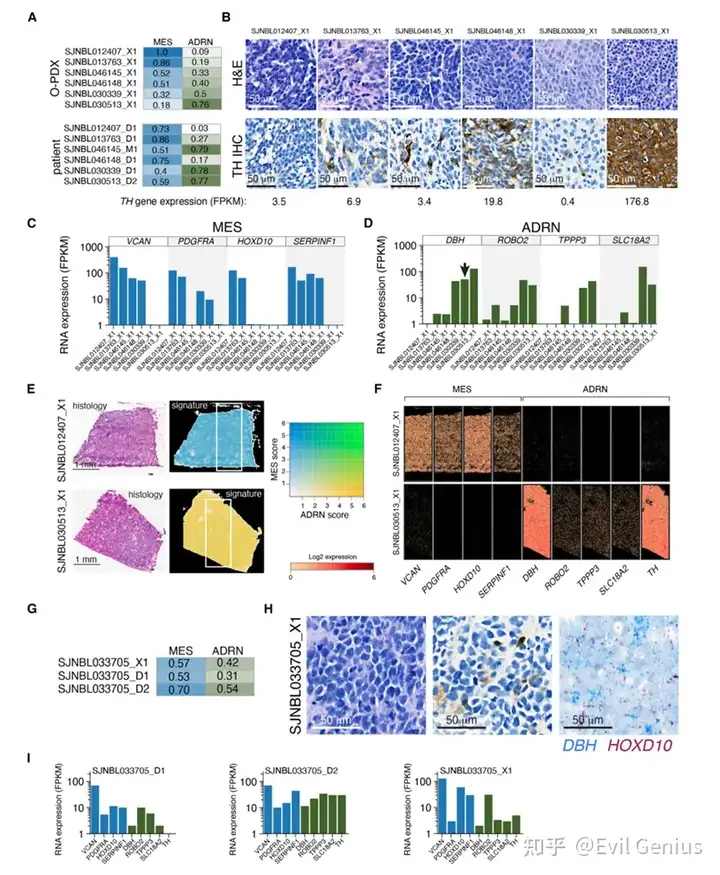
- 选择6例O-PDX,涵盖MES和ADRN基因表达评分范围:2例高MES评分(SJNBL012407_X1[治疗]和SJNBL013763_X1[未治疗]),2例高ADRN评分(SJNBL030339_X1[治疗]和SJNBL030513_X1[治疗]),2例混合(SJNBL046145_X1[治疗]和SJNBL046148_X1[未治疗])。
- 匹配的患者肿瘤具有相似的基因表达评分。
- TH基因和TH蛋白表达通常与ADRN评分一致,与MES评分负相关;然而,包括SJNBL030339_X1作为高ADRN、低TH的例子。SJNBL030339_X1表达儿茶酚胺生物合成途径中的其他基因,如多巴胺β-羟化酶(DBH),与其ADRN评分一致。
Visium HD:
- 对这6例O-PDX以及10例患者肿瘤的冷冻切片进行Visium HD分析。
- ADRN/MES基因表达特征和单个基因的表达与每个样本的ADRN/MES评分一致。
- 使用双色原位杂交(ISH)和bulk RNA-seq验证Visium HD结果。
Xenium空间转录组学:
- 基于O-PDX衍生的MES和ADRN特征开发定制探针集,对2例O-PDX(1例MES肿瘤SJNBL012407_X1[治疗],1例混合肿瘤SJNBL033705_X1[治疗])和5例患者肿瘤(4例治疗,1例未治疗)进行Xenium空间转录组学,结合Xenium免疫肿瘤学面板。
- SJNBL033705_D1来自一名2岁高危、MYCN扩增神经母细胞瘤患者的诊断时淋巴结;SJNBL033705_D2在4个疗程化疗后获取,SJNBL033705_X1源自该治疗后样本。
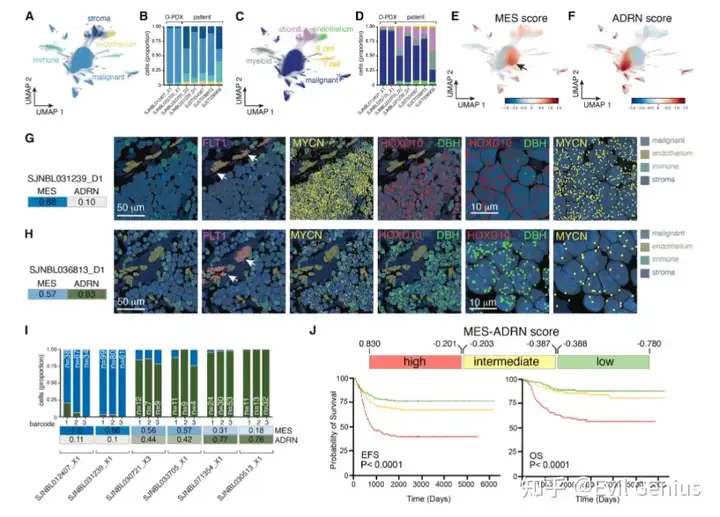
- 分割3,132,295个单细胞,使用sc/snRNA-seq和Slide-SeqV2注释识别恶性和非恶性群体。
- 具有MES和ADRN基因表达特征及高MYCN表达的恶性细胞明显分离,而van Groningen MES特征主要与非恶性TME细胞相关。
- Xenium结果通过DBH和HOXD10的ISH以及MYCN的免疫荧光验证。
慢病毒条形码:
- 对6例O-PDX(2 MES、2 ADRN、2混合)进行慢病毒条形码标记。
- 除最ADRN的O-PDX(SJNBL030513_X1)外,在MES和ADRN细胞群体中检测到相同条形码。
- 具有单个条形码的ADRN和MES细胞比例与肿瘤中ADRN/MES细胞的总体特征和比例成比例。
临床意义:
- 将ADRN/MES特征应用于SEQC数据集中的498例诊断未治疗神经母细胞瘤bulk RNA转录组。
- 计算每个患者的复合MES-ADRN评分:归一化MES评分减去归一化ADRN评分,评分越高反映越间充质样的转录状态。
- 对于Kaplan-Meier可视化,患者按复合评分三分位数分为MES高(0.830至-0.201)、中间(-0.203至-0.387)和MES低(-0.388至-0.780)。
- 在多变量Cox模型中,调整年龄和临床风险组后,较高的复合MES-ADRN评分与较差的无事件生存期(EFS)(HR=1.87;95% CI,1.15-3.06;p=0.012)和总生存期(OS)(HR=2.44;95% CI,1.35-4.41;p=0.003)相关。
- 添加MES-ADRN评分显著改善模型拟合,超越临床协变量。
- 相比之下,源自细胞系的van Groningen特征在相同建模框架下未提供显著的增量预后信息。
- 在高危亚组中,单变量Cox分析显示MES-ADRN评分与较差OS相关,而EFS关联无统计学显著性。
- 总之,bulk RNA-seq和sc/snRNA-seq结合类器官形态学、IHC、ISH、蛋白质组学、电子显微镜和空间转录组学(Visium HD和Xenium)确认了O-PDX和患者中ADRN和MES神经母细胞瘤细胞的存在,并提供了MES/ADRN评分与临床结果相关的证据。
讨论
主要贡献
- 提出了一个涵盖疾病临床谱的神经母细胞瘤肿瘤整合数据集,结合6种空间组学技术与sc/snRNA-seq、基因组学和bulk RNA-seq。
- 发现神经母细胞瘤具有 distinct 的CN,并使用整合方法解决了关于患者中是否存在MES神经母细胞瘤细胞的长期争议。
- 证明源自神经母细胞瘤细胞系微阵列数据的MES基因表达特征不能准确反映O-PDX和患者中的MES程序。
- 因此,从O-PDX数据开发了新的MES和ADRN特征,并对449例样本评分,确认O-PDX和患者中均存在ADRN和MES神经母细胞瘤细胞。
- 跨2个空间平台、电子显微镜、染色质 profiling、蛋白质组学和3D类器官功能研究的验证进一步支持MES/ADRN评分与临床特征的相关性。
- 条形码实验提供了O-PDX中MES和ADRN神经母细胞瘤细胞共同起源的证据。
空间 profiling 技术
- 空间 profiling 技术改变了原位映射肿瘤细胞结构的能力,但其在罕见儿童癌症中的应用受到缺乏标准化、跨模态数据集的限制。
- 通过从10例存档神经母细胞瘤肿瘤生成MIBI、CODEX和Slide-SeqV2数据,并排基准测试了每种 assay。
- MIBI提供非常高的空间分辨率,适用于存档FFPE组织,但受限于可有效分析的视野大小。
- CODEX通过全切片成像克服了这一限制,但在HTAPP数据采集时,仅被认证用于新鲜冷冻组织。在FFPE TMA上扩展CODEX分析以确认CN的存在。
- MIBI和CODEX都受抗体可用性限制,大多数验证的抗体靶向免疫标志物;因此,这些平台非常适合 profiling TME免疫细胞,但无法明确识别ADRN和MES肿瘤群体。
- Slide-SeqV2提供更广泛的细胞群体数据,但需要与sc/snRNA-seq整合以跨样本映射细胞类型。
- 根据经验,结合空间蛋白质组学、空间转录组学和scRNA-seq技术产生了互补的跨模态信息。
- 所有3个平台一致支持神经母细胞瘤具有 discrete 肿瘤CN的结论。这一点很重要,因为神经母细胞瘤免疫冷淡的假设可能反映细胞群体的这种分离,而不是免疫细胞的真正缺失。
- 不幸的是,由于区分恶性与TME细胞(具有重叠MES基因表达谱)的挑战,HTAPP平台均不足以辨别ADRN/MES肿瘤细胞异质性。
MES细胞检测
- 尽管一些肿瘤基本上100% ADRN,但反过来不成立。即使最富集MES的O-PDX模型也包含1%-5%的ADRN。
- 先前研究遗漏MES细胞是因为它们使用源自细胞系的基因表达特征。
- 更近期的工作识别出一种MES状态,在治疗后增加并与较差的化疗反应相关,在神经母细胞瘤PDX中也报道了类似发现。
- 然而,解释患者肿瘤bulk RNA-seq的MES基因特征时需要谨慎,因为TME可能贡献可变数量的非恶性MES细胞。
- TH恶性细胞比例与MES肿瘤细胞比例负相关,除了罕见的失去TH表达的ADRN肿瘤。
- 结合IHC、bulk RNA-seq、空间组学和多重ISH的整合方法应为未来研究提供关于神经母细胞瘤肿瘤细胞异质性的有用数据。
未来方向
- 探索免疫细胞在CN之间迁移时以及在治疗背景下(包括抗GD2免疫治疗)基因表达程序的变化,可能为抗原导向细胞毒性的分子机制提供新见解。
- 未来研究应使用更多治疗史更均一的患者队列,理想情况下在临床试验背景下,以细化ADRN和MES细胞群体,因为迄今为止分析的队列来自异质性治疗的患者群体。
- 此类研究还将有助于确定较小的MES基因子集(而非完整特征)是否保留预后意义,这是迈向更实用、前瞻性适用生物标志物的重要一步。
- 一个关键未决问题是:是否有一个群体优先在治疗中存活并驱动复发。在Xenium分析的治疗后样本中,观察到ADRN和MES基因的共表达,提示治疗后可能出现混合或过渡状态。
Limitations of the study
- 测序平台差异:新鲜标本进行scRNA-seq,存档冷冻样本进行snRNA-seq,后者检测到的每个细胞基因较少,可能引入跨样本比较的变异性。
- 空间 profiling 平台差异:空间 profiling 跨越3个平台,具有不同的组织要求、分辨率和多重能力;虽然10例肿瘤在3种模态上进行分析以进行交叉验证,但更广泛队列依赖不同的平台组合。
- 组织处理差异:CODEX在新鲜冷冻组织上进行,MIBI在FFPE组织上进行,可能影响蛋白质保存和细胞类型注释的可比性。
- 抗体面板差异:抗体面板在不同平台和队列间不同(发现队列中41 vs. 52种抗体;TMA验证队列中30种),限制了直接跨队列细胞类型比较。
- 治疗状态:大多数先前sc/snRNA-seq研究在治疗前诊断样本上进行。相比之下,本研究的54例样本中仅21例未治疗。同样,大多数O-PDX(17/23)源自化疗期间的患者样本。治疗可能改变相对ADRN和MES肿瘤细胞,因此本队列中的分布可能不完全代表诊断样本。然而,在治疗和未治疗的O-PDX和患者肿瘤中都发现了高MES评分和高ADRN评分的明确例子。此外,ADRN/MES基因表达特征在SEQC数据集中对未治疗诊断患者保留了预后价值。
方法总结
- sc/snRNA-seq数据分析:使用Cell Ranger v3.0进行解复用、比对和UMI计数。使用CellBender去除背景噪声,Scrublet识别双细胞,过滤低质量细胞。使用Conos进行数据整合,SingleR进行初始注释。使用inferCNV推断染色体拷贝数畸变以识别恶性细胞。使用LIGER进行非负矩阵分解,识别细胞类型和状态。
- Bulk测序用于WES/WGS和体细胞变异调用:使用Covaris LE220超声仪剪切基因组DNA,使用TruSeq DNA Exome Library Prep Kit或TruSeq DNA Rapid Exome Library Prep Kit制备文库。配对末端100循环测序在NovaSeq 6000或Illumina HiSeq 4000上进行。
- Bulk RNA-seq:使用Trizol提取RNA,TruSeq Stranded Total RNA Library Prep Kit制备文库,NovaSeq 6000测序。
- Bulk RNA-seq分析:STAR比对,RSEM定量,limma差异表达分析。
- 细胞特征评分:使用GSVA R包中的ssGSEA方法计算单样本基因集富集评分。
- ChIP-seq分析:重新分析Zeineldin等人2020年报道的神经母细胞瘤O-PDX ChIP-seq数据。
- 免疫组化:组织在10%中性缓冲福尔马林中固定,石蜡包埋,4-μm切片。使用Ventana DISCOVERY ULTRA自动染色机。
- 多重免疫荧光:FFPE组织切片4-μm,使用U DISCOVERY 5-Plex IF程序。
- DNA甲基化样本处理和分析:使用Illumina Infinium MethylationEPIC v2.0 BeadChip。
- PLANB:手动注释肿瘤-基质边界,生成补丁掩模,逐步提取肿瘤周围微环境。
- CODEX载玻片染色和数据处理:按照Goltsev等人描述进行切片预处理。
- Slide-SeqV2数据分析:使用Slide-Seq tools比对管道生成基因表达矩阵,Seurat过滤和聚类,RCTD反卷积。
- Visium HD空间基因表达:新鲜冷冻组织样本,10μm切片,Visium HD Spatial Gene Expression for Fresh Frozen Tissue Preparation Guide。
- Visium HD数据处理和分析:ImageJ配准,Space Ranger v4.0处理,Scanpy质量控制。
- Xenium In Situ方法:5μm FFPE组织切片,Xenium Human Immuno-Oncology Profiling Panel。
- Xenium数据预处理和质量控制:Scanpy和Rapids-singlecell框架,Harmony整合。
- Xenium聚类和细胞类型注释:k-NN图构建,Leiden算法聚类,Wilcoxon秩和检验识别DEG。
- Xenium层次分类和肿瘤状态分析:半监督高斯混合模型(GMM)方法。
- Xenium外部验证:将HTAPP和Slide-seq数据集的外部参考特征投影到Xenium数据上。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号