课前准备--蛋白质活性位点的研究与突变体设计
原创
课前准备--蛋白质活性位点的研究与突变体设计
原创
追风少年i
发布于 2026-09-01 08:48:59
发布于 2026-09-01 08:48:59
作者,Evil Genius
这一篇我们来梳理一下蛋白质活性位置的研究以及突变体设计
蛋白质三维结构 → 定位活性/结合位点 → 找关键残基 → 设计突变体 → 实验验证功能变化 → 反推作用机制。
一、首先要明确:什么叫“活性位点”?
活性位点(active site)通常是蛋白质中直接参与催化反应的区域。
但实际研究中还经常需要区分:
类型 | 含义 | 典型例子 |
|---|---|---|
Active site | 直接参与催化 | 酶的催化残基 |
Binding site | 与底物/配体结合 | ATP结合口袋 |
Allosteric site | 远离活性中心,但调控活性 | 变构调控位点 |
Interface | 蛋白-蛋白相互作用界面 | 受体-配体 |
Hotspot residue | 对结合/功能贡献特别大的残基 | Tyr、Trp、Phe、Arg等 |
所以研究“活性位点”实际上通常不是只找一个氨基酸,而是:
找到一个空间区域 → 找到其中关键残基 → 判断哪些残基真正决定功能。
二、第一步:获得蛋白质三维结构
这是整个流程的基础。
可以从几个来源获得:
① 实验结构
例如:
- X-ray crystallography
- Cryo-EM
- NMR
最理想,因为可以直接观察蛋白质的空间构象。
② AlphaFold预测结构
如果没有实验结构,可以使用:
Google DeepMind 的 AlphaFold 预测结构。
但要注意:
预测结构 ≠ 实验结构。
尤其需要关注:
- 活性口袋
- 柔性loop
- 蛋白-蛋白界面
- 配体结合构象
这些区域预测可靠性可能低于蛋白整体折叠。
三、第二步:从结构中寻找“口袋”
假设你已经有一个蛋白结构:
              Protein
        ┌─────────────────┐
        │                 │
        │      ┌────┐     │
        │      │    │     │
        │      │口袋│     │
        │      │    │     │
        │      └────┘     │
        │                 │
        └─────────────────┘
可以使用:
- CASTp
- P2Rank
- fpocket
- DoGSite
- SiteMap
- Schrödinger SiteMap
寻找:
凹槽、空腔、疏水口袋、带电区域。
这些地方很可能是配体结合区域。
四、如果已经有配体,这是最容易的情况
例如你有:
蛋白 + 小分子
那么直接观察配体周围的残基。
例如:
                 Tyr123
                   │
                   ↓
          Phe145 ─ Ligand ─ Lys147
                   ↑
                   │
                 Asp178
可以定义一个距离:
配体周围 4 Å以内的氨基酸
作为候选结合残基。
例如:
Residue       Distance
Tyr123         2.8 Å
Phe145         3.6 Å
Lys147         3.1 Å
Asp178         4.0 Å
Val181         4.5 Å
那么:
Tyr123、Phe145、Lys147、Asp178
就可以作为候选关键残基。
但这里有一个非常重要的概念:
距离近 ≠ 一定重要。
还需要判断它们形成了什么相互作用。
五、进一步分析“残基和配体怎么相互作用”
这是设计突变体最关键的一步。
常见相互作用包括:
1. 氢键
例如:
Protein
   O
   │
   │ H
   ↓
  O──H
  Ligand
典型残基:
- Ser
- Thr
- Tyr
- Asn
- Gln
- Asp
- Glu
- His
2. 盐桥
例如:
Lys+ ───── COO-常见:
- Lys
- Arg
- Asp
- Glu
3. 疏水作用
例如:
Phe
Trp
Tyr
Leu
Ile
Val
Met
形成疏水口袋。
4. π–π相互作用
芳香族残基尤其重要:
- Phe
- Tyr
- Trp
例如:
     Phe
    ╱╲
   ╲╱
   ╱╲
  Ligand aromatic ring
5. 阳离子–π作用
例如:
Arg+
  ↓
 aromatic ring
六、第三步:确定“关键残基”
这一步不能只依赖结构。
通常结合:
结构证据
例如:
Tyr123距离配体2.8 Å,并形成氢键。
保守性证据
如果多个物种都保守:
Human      Tyr
Mouse      Tyr
Rat        Tyr
Dog        Tyr
Zebrafish  Tyr
说明这个位置可能具有重要功能。
可以使用:
- Multiple sequence alignment
- ConSurf
- BLAST
- Clustal Omega
文献证据
如果已有研究:
Tyr123Ala导致酶活下降80%
那就属于非常强的证据。
分子对接
如果没有复合物结构,可以:
蛋白 + 配体 → docking
例如:
- AutoDock Vina
- Glide
- GOLD
得到:
Ligand
   ↓
Protein binding pocket
   ↓
Tyr123
Phe145
Lys147
Asp178
然后进一步分析相互作用。
七、第四步:如何设计突变体?
这里是最重要的部分。
突变不是简单地“把氨基酸换掉”。
核心思想是:
通过改变某个残基的性质,观察蛋白功能发生什么变化。
八、最经典的:Alanine scanning
这是最常用的突变策略之一。
例如:
WT:

Tyr123
Phe145
Lys147
Asp178
设计:
Y123A
F145A
K147A
D178A
即:
Tyr → Ala Phe → Ala Lys → Ala Asp → Ala
为什么经常选择 Ala?
因为:
Ala侧链比较小,同时不会引入很强的新化学性质。
因此可以近似理解为:
“去掉这个残基的大部分侧链功能”。
九、不同问题对应不同突变策略
这是设计突变体最值得掌握的一张表。
研究目的 | 突变策略 | 示例 |
|---|---|---|
判断残基是否重要 | Ala扫描 | Y123A |
去除正电荷 | Lys/Arg → Ala | K147A |
去除负电荷 | Asp/Glu → Ala | D178A |
改变电荷 | Asp → Lys | D178K |
去除芳香性 | Phe → Ala | F145A |
保留芳香性但改变大小 | Phe → Tyr | F145Y |
去除羟基 | Tyr → Phe | Y123F |
改变极性 | Ser → Ala | S200A |
改变空间大小 | Val → Ala | V201A |
改变柔性 | Gly → Ala | G202A |
增强柔性 | Ala → Gly | A202G |
破坏二硫键 | Cys → Ala/Ser | C300A |
测试电荷作用 | Lys → Glu | K147E |
十、一个非常经典的例子
假设结构分析发现:
              Tyr123
                │
             H-bond
                │
                ↓
             Ligand

Phe145 ───── Ligand ───── Lys147
              │
           Asp178
你可以设计:
第一组:Ala突变
Y123A
F145A
K147A
D178A
观察:
谁对活性影响最大?
第二组:机制突变
假设:
Tyr123通过OH与配体形成氢键。
那么:
Y123F就非常漂亮。
因为:
Tyr → Phe
只改变:
OH基团
而保留:
芳香环
所以可以回答:
这个氢键是不是关键?
如果:
WT       活性 100%
Y123A    活性 10%
Y123F    活性 15%
说明 Tyr 的羟基很可能非常重要。
十一、如果是带电残基怎么办?
例如发现:
Lys147+ ←→ Ligand−可以设计:
K147A
去除正电荷:
Lys+ → AlaK147E
甚至进行电荷反转:
Lys+ → Glu−如果:
WT      100%
K147A    20%
K147E     5%
说明这个位置的正电荷可能非常重要。
十二、突变体设计最好不要只做一个
一个好的机制研究通常是:
               候选残基
                   ↓
          ┌────────┼────────┐
          ↓        ↓        ↓
        Ala突变   保守突变   电荷反转
          ↓        ↓        ↓
        Y123A    Y123F     Y123K
这样证据链会非常完整。
十三、最重要的一点:区分“结合”与“活性”
例如:
WT
 ↓
Ligand binding
 ↓
Catalytic activity
某个突变体:
Y123A
 ↓
binding ↓
activity ↓
那么比较容易解释:
Tyr123参与配体结合。
但如果:
Y123A

binding:100%
activity:10%
那么就非常有意思。
说明:
Tyr123可能不是决定配体结合,而是参与催化过程或构象变化。
所以最好同时测:
Binding
例如:
- SPR
- ITC
- MST
- BLI
以及:
Function
例如:
- enzymatic activity
- phosphorylation
- reporter assay
- cell proliferation
十四、如果进一步加入分子对接 + MD
这就和分子对接、GROMACS、PyRosetta完全接起来了。
可以形成:
                蛋白质结构
                    ↓
             活性位点预测
                    ↓
             关键残基筛选
                    ↓
            ┌───────┴───────┐
            ↓               ↓
         WT结构           Mutant结构
            ↓               ↓
        Molecular Docking
            ↓               ↓
       WT-Ligand         Mut-Ligand
            ↓               ↓
             Molecular Dynamics
                    ↓
       ┌────────────┼────────────┐
       ↓            ↓            ↓
    RMSD/RMSF     H-bond      Binding energy
       ↓            ↓            ↓
             结构稳定性/相互作用
                    ↓
              实验突变验证
                    ↓
             活性/结合实验
十五、进一步可以做“计算突变扫描”
例如有一个口袋:
          Tyr123
          Phe145
          Lys147
          Asp178
          Leu180
          Val181
可以计算:
Y123A
F145A
K147A
D178A
L180A
V181A
然后比较:
WT vs Mutant
包括:
- docking score
- MM/GBSA
- hydrogen bonds
- contact frequency
- RMSD
- RMSF
- SASA
- binding free energy
- residue energy decomposition
最后得到:
Residue       ΔG contribution

Tyr123        -4.8 kcal/mol
Phe145        -3.9 kcal/mol
Lys147        -5.2 kcal/mol
Asp178        -1.2 kcal/mol
Leu180        -0.8 kcal/mol
Val181        -0.5 kcal/mol
那么:
Lys147、Tyr123、Phe145
就成为优先验证对象。
十六、真正比较完整的科研设计
如果以后要做一篇比较完整的结构机制文章,可以采用:
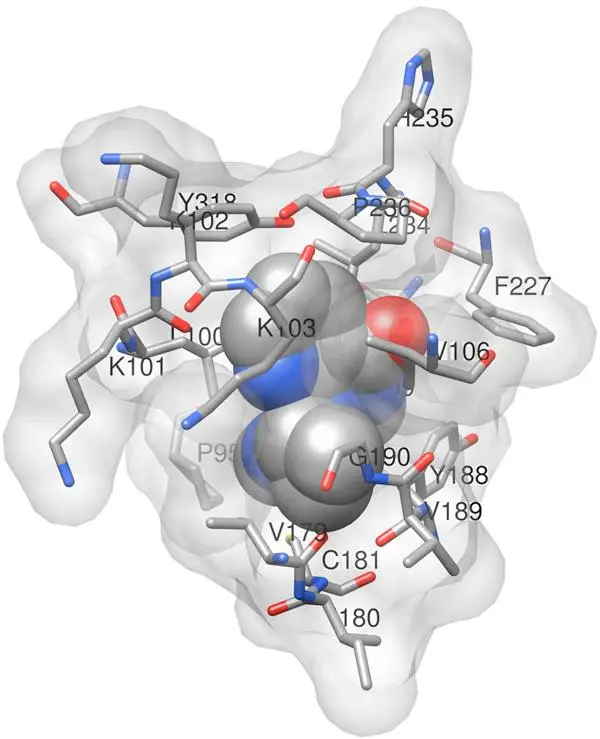
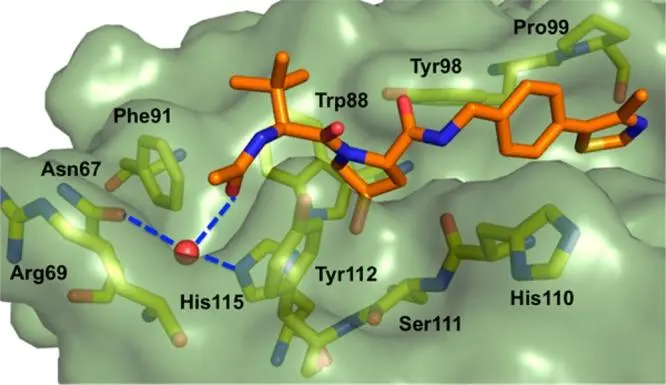
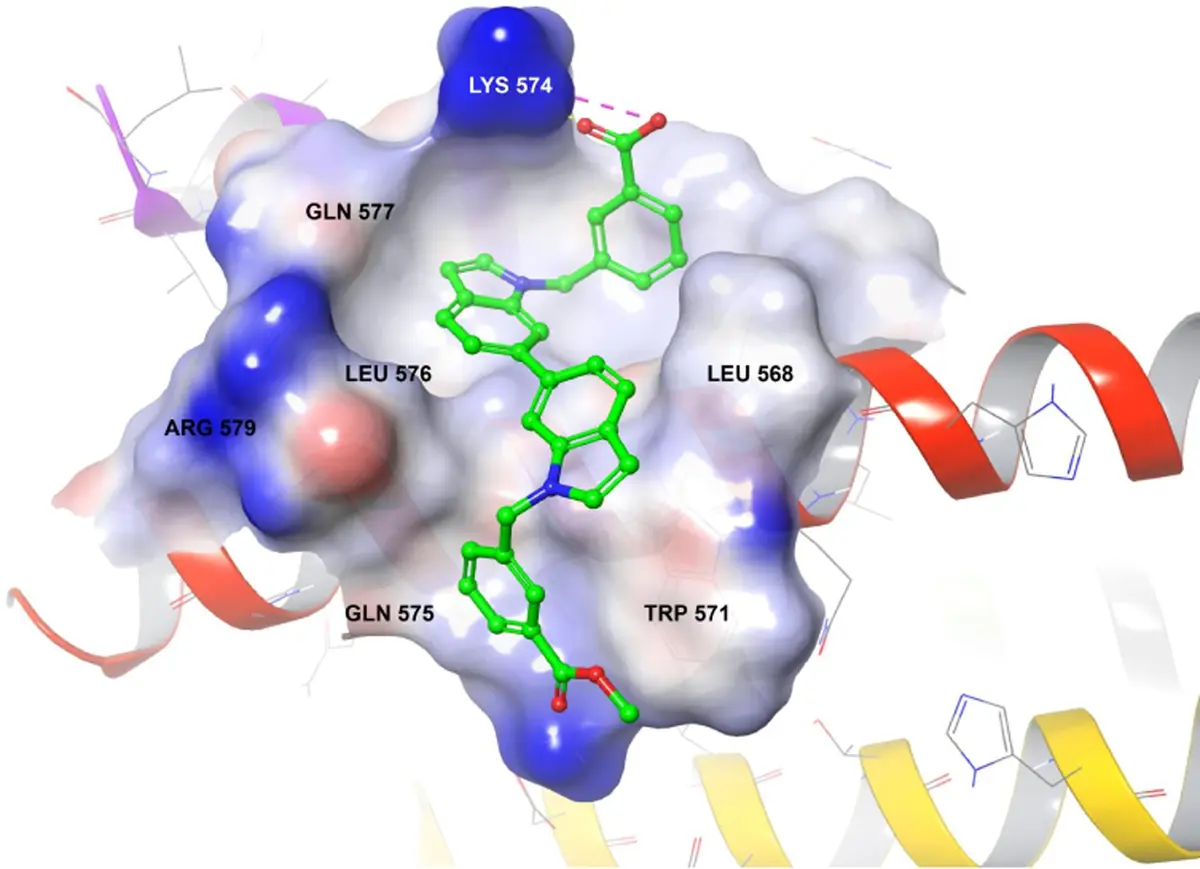
Step 1:蛋白质结构
获得:
PDB / AlphaFold结构
↓
Step 2:口袋预测
CASTp / P2Rank / SiteMap
↓
Step 3:配体结合
实验复合物结构 / Docking
↓
Step 4:候选残基
通常结合:
距离 + 氢键 + 疏水作用 + 电荷 + 保守性
↓
Step 5:突变设计
例如:
Y123A
Y123F

F145A

K147A
K147E

D178A
D178K
↓
Step 6:MD
比较:
WT-Ligand
Mutant-Ligand
↓
Step 7:实验
检测:
Protein expression
       ↓
Protein stability
       ↓
Ligand binding
       ↓
Enzyme/activity
       ↓
Cellular phenotype
↓
Step 8:机制模型
最终形成:
某残基通过某种相互作用稳定配体结合构象,并进一步调控蛋白活性。
看到一个结构以后,不要马上做突变。
按照:
“这个残基为什么值得突变?”
来判断。
观察到的现象 | 优先突变 |
|---|---|
与配体形成氢键 | Y→F、S→A、T→A、N→A |
与配体形成盐桥 | K/R→A、D/E→A |
芳香环堆积 | F/Y/W→A |
疏水口袋 | L/I/V/F/W→A |
怀疑电荷作用 | K→A、K→E |
怀疑氢键作用 | Y→F |
怀疑空间位阻 | 大残基→A/G |
怀疑柔性 | G→A 或 A→G |
怀疑二硫键 | C→A/S |
怀疑变构传递 | 远端保守残基 + MD/网络分析 |
最核心的原则是:
结构告诉你“可能是谁”;计算告诉你“为什么”;突变告诉你“是不是”;功能实验告诉你“是否真正重要”。
如果把这个思路放到 EGFR → 突变 → 分子对接 → GROMACS分子动力学上,就可以进一步具体到:EGFR L858R、T790M、C797S 这类突变分别如何影响ATP/抑制剂结合,以及如何根据EGFR结构设计一套WT/突变体+对接+MD的完整实验方案。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号